Pentru ce e făcut corpul tău?
Picioarele tale sunt cu milioane de ani mai vechi decât creierul
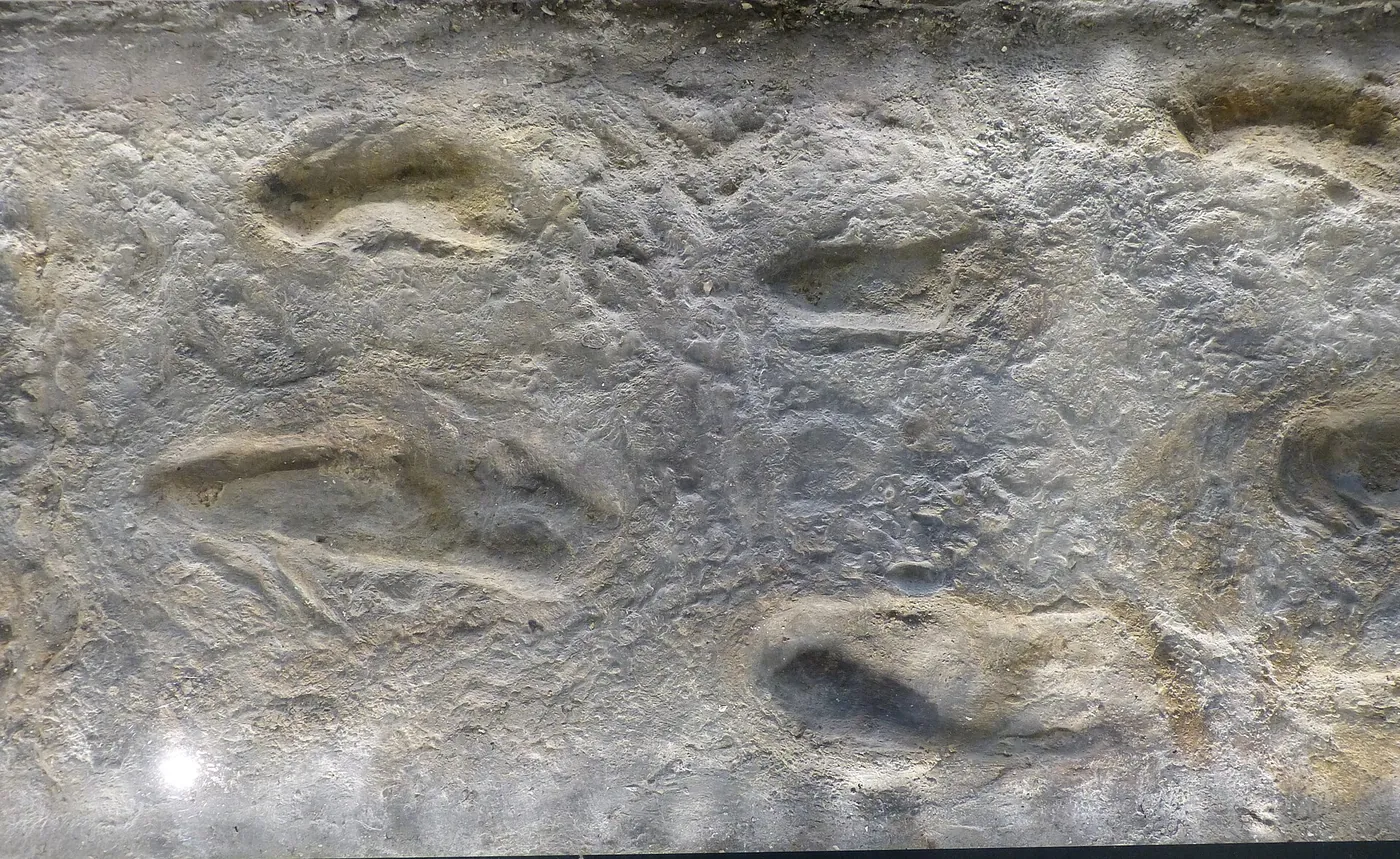
Niște ființe care mergeau în două picioare, cu un creier cât al unui cimpanzeu, au lăsat urme de pași în Tanzania acum 3,66 milioane de ani. Mărirea spectaculoasă a creierului a venit mult mai târziu, începând de acum circa două milioane de ani. Mută glisorul de sub schelet, de la cimpanzeu, prin trei fosile, până la tine, și vezi ce părți se schimbă primele.
Cimpanzeuspecie actuală, pentru comparațieMerge în două picioare cu șoldurile și genunchii îndoiți, are osul iliac înalt și îngust, degetul mare de la picior apucă, iar brațele sunt mai lungi decât picioarele.
- Cimpanzeu (specie actuală, pentru comparație). Merge în două picioare cu șoldurile și genunchii îndoiți, are osul iliac înalt și îngust, degetul mare de la picior apucă, iar brațele sunt mai lungi decât picioarele.
- Ardipithecus (acum 4,4 milioane de ani). Un os iliac mai scurt, pentru mersul în două picioare pe sol, și canini mici, dar degetul mare de la picior încă apuca, iar talpa nu avea arc.
- Lucy (acum 3,2 milioane de ani). Un bazin scurt și lat, remodelat pentru mersul în două picioare, femurul înclinat spre genunchi și, la specia ei, tălpi boltite, cu degetul mare aliniat cu celelalte. Șase cranii ale speciei ei au cel mult 550 cm³; creierul unui cimpanzeu are cam 384.
- Băiatul de la Turkana (acum 1,6 milioane de ani). Un Homo erectus timpuriu, cu picioare lungi, antebrațe scurte și un corp apropiat de al nostru. Cinci cranii africane de Homo erectus, vechi de circa 1,9–1,5 milioane de ani, au între 691 și 909 cm³.
- Tu (azi). Un creier de circa 1.336 cm³, de 3,5 ori cât al unui cimpanzeu, o față retrasă sub el și o bărbie.
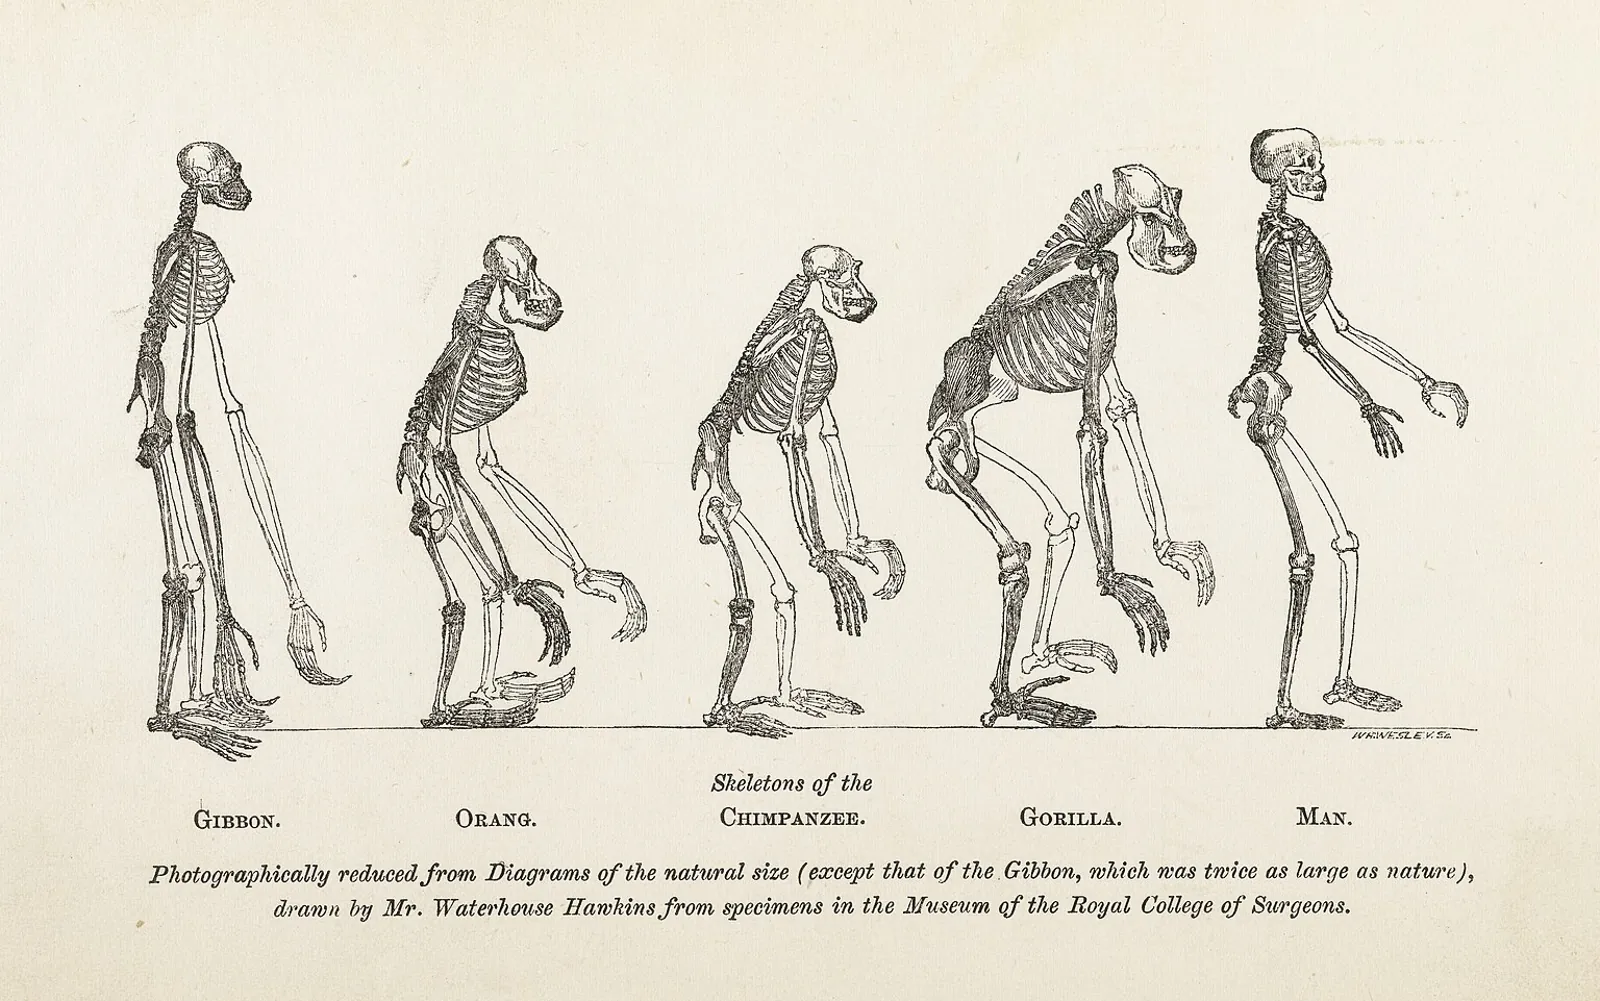
Cimpanzeul e cel mai apropiat corp viu cu care ne putem compara, nu strămoșul nostru: linia lui evoluează de tot atâta timp cât a noastră, de la o despărțire petrecută acum cel puțin șapte–opt milioane de ani, după o estimare. Dacă strămoșul comun semăna cu un cimpanzeu e încă în discuție. La fiecare etapă fosilă, părțile pe care oasele nu le arată schimbate rămân în forma de cimpanzeu. Desenul e o vedere laterală la scară: lungimea brațelor și a picioarelor urmează rapoarte măsurate, la aceeași lungime a trunchiului; contururile și mersul sunt desenate de mână, nu decalcate.
Comparația aceasta se face din 1699
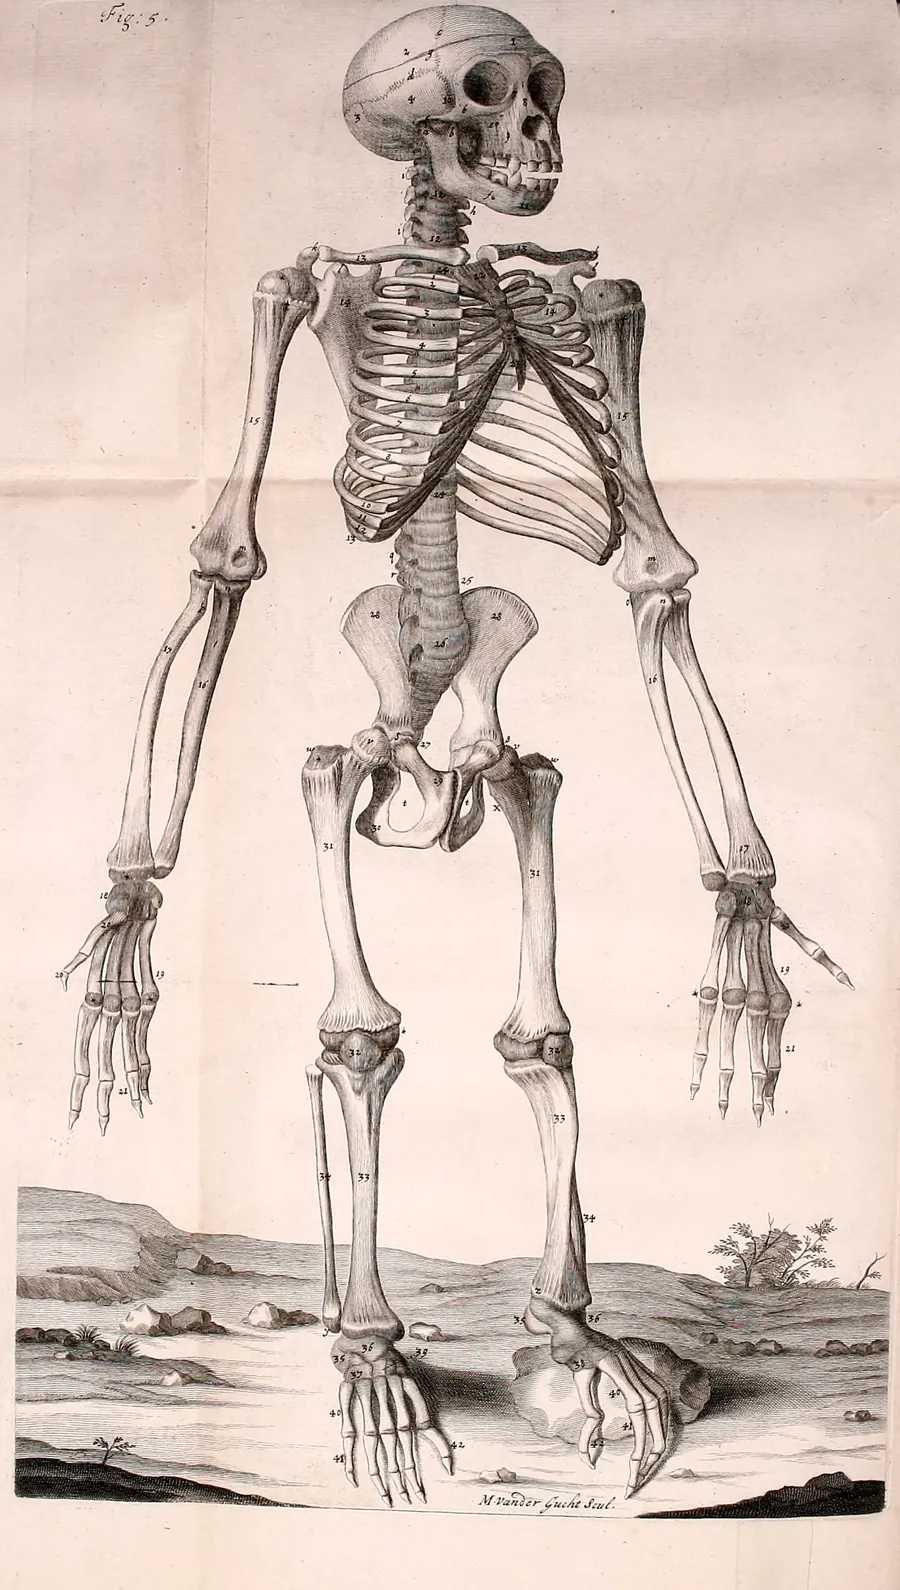
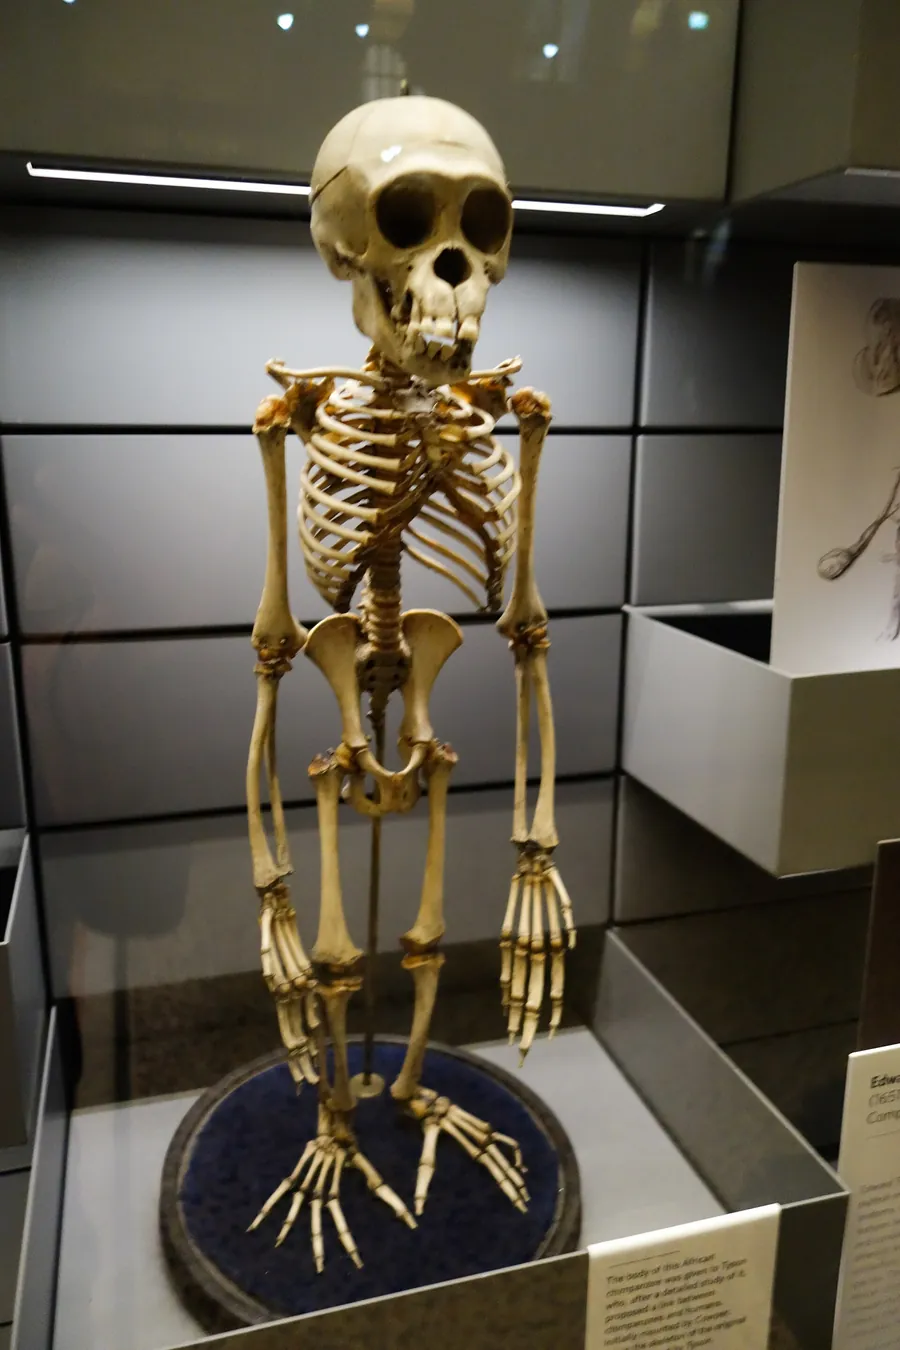
În 1699, medicul londonez Edward Tyson a publicat anatomia unei maimuțe tinere aduse din Angola, comparată parte cu parte cu a unei maimuțe mici, a unei maimuțe mari și a unui om. A numit-o „Pygmie”; era un cimpanzeu. Lucrarea se încheie cu două liste: 48 de trăsături prin care semăna cu omul mai mult decât celelalte maimuțe și 34 de trăsături prin care nu semăna.
A doua listă seamănă cu un cuprins al paginii de față: o creastă de os deasupra ochilor, un police mic, degetul mare de la picior „depărtat de celelalte, ca un deget mare de la mână”, un os iliac „mai lung, mai îngust” decât al omului, treisprezece coaste pe fiecare parte în loc de douăsprezece.
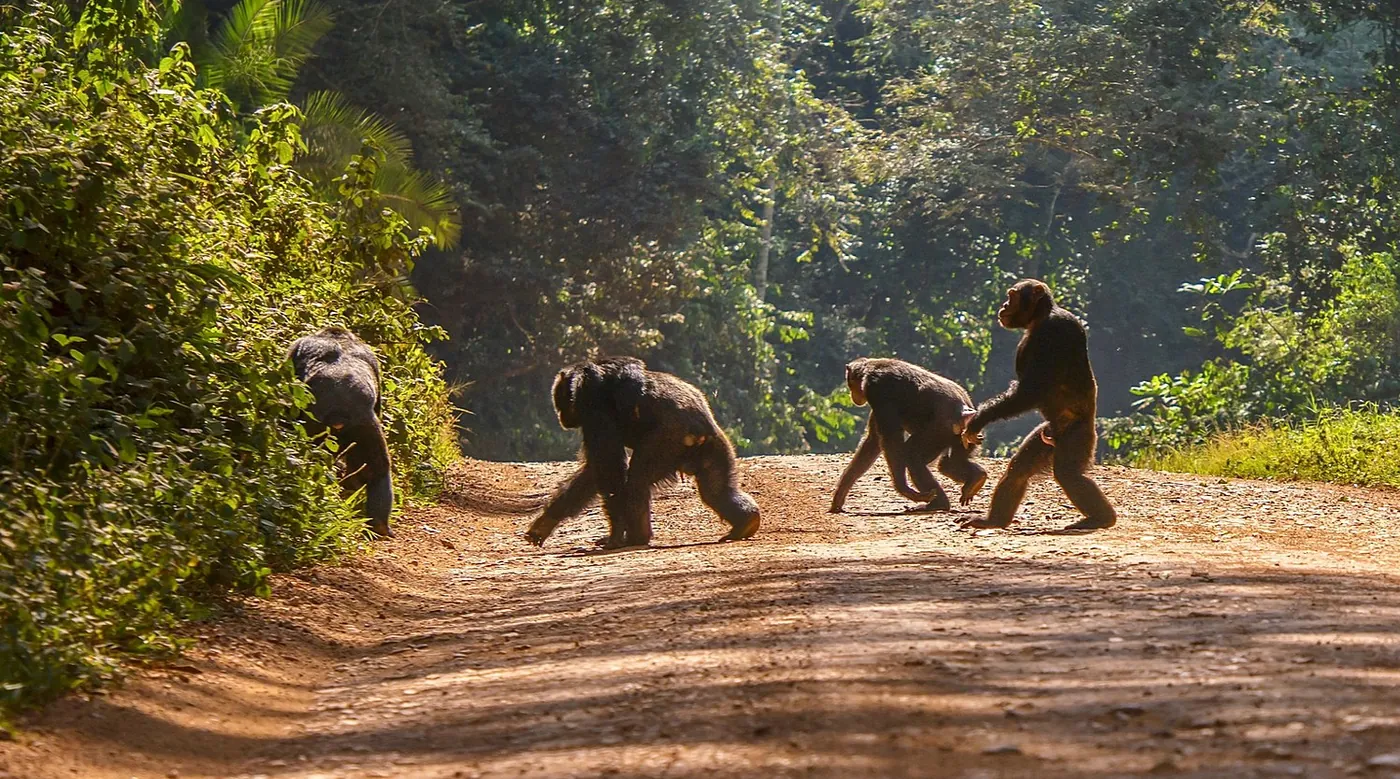
Tyson a greșit totuși într-o privință. A crezut că animalul lui era „făcut de natură să meargă drept”. Cimpanzeii pot merge în două picioare, dar îi costă mult, după cum arată numerele de mai jos.
1 · Mersul
Un corp făcut să meargă departe cu puțină energie
Pe kilogram și pe metru, un cimpanzeu care merge în două picioare consumă de circa patru ori mai mult oxigen decât tine. Aproape fiecare os dintre craniu și călcâi a fost remodelat pentru mersul în două picioare, iar remodelarea face fiecare pas mult mai ieftin.
Unul lângă altul
Două schelete la aceeași lungime a trunchiului
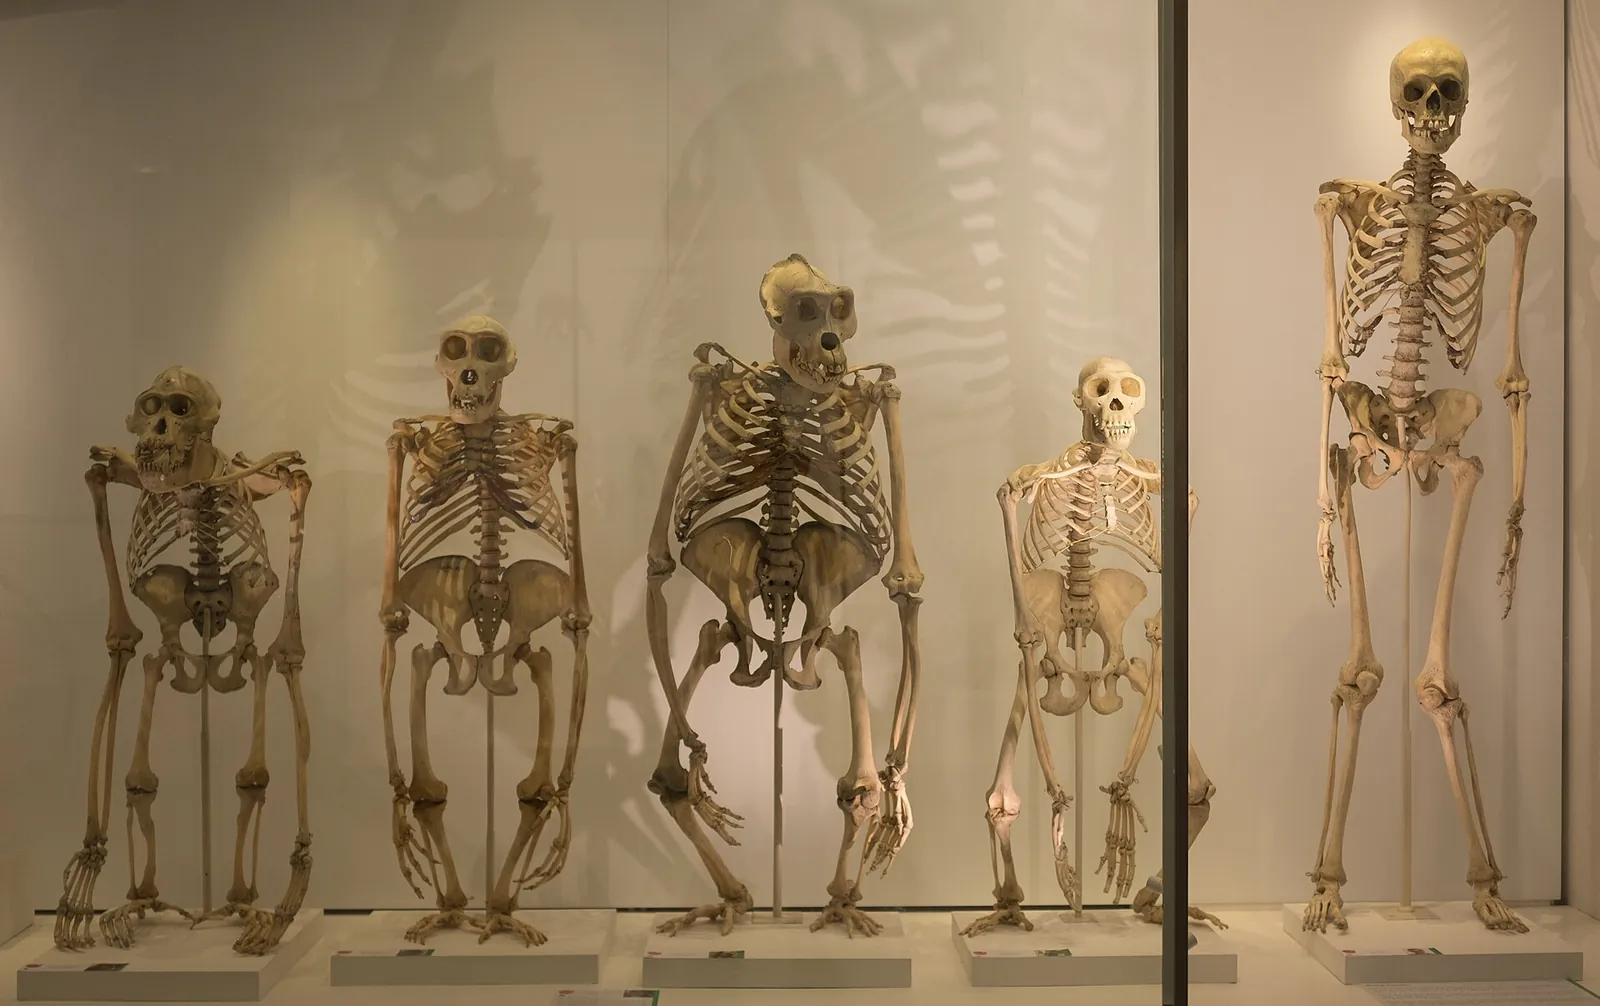
La aceeași lungime a trunchiului, primul lucru care se vede sunt proporțiile. Brațele cimpanzeului sunt mai lungi decât picioarele. Într-un studiu, cinci cimpanzei și patru oameni cântăreau cam la fel (în medie 60 și 69 kg), dar la oameni șoldul era de două ori mai sus de sol: 92 cm față de 46.
Capul
Craniul stă deasupra coloanei
Orificiul prin care măduva spinării iese din craniu, gaura occipitală mare, e la tine mai în față decât la oricare alt primat măsurat și e orientat în jos. Craniul tău se sprijină în echilibru pe coloană; al cimpanzeului atârnă în fața ei și e ținut de mușchii cefei. Și cangurii, și rozătoarele care țopăie au gaura occipitală deplasată în față.
Poziția și unghiul găurii se pot schimba independent, iar valorile măsurate la maimuțele mari și la fosile se suprapun, așa că poziția găurii nu poate dovedi, singură, că o fosilă mergea în două picioare.
Șalele
O zonă lombară mai lungă, curbată spre interior
Cimpanzeii au de obicei patru vertebre lombare, uneori trei; tu ai de obicei cinci. La maimuțele mari, oasele iliace înalte o prind între ele pe cea mai de jos, așa că șalele abia se îndoaie, iar trunchiul stă aplecat în față. Zona ta lombară se curbează spre interior și aduce greutatea părții de sus a corpului deasupra șoldurilor. La femei curbura e întărită, ceea ce ajută în timpul sarcinii.
Bazinul
Un os iliac curbat spre lateral
Osul iliac al cimpanzeului e o lamă înaltă și plată. Al tău e scurt și lat și se curbează pe partea laterală a corpului, așa că doi mușchi fesieri, fesierul mijlociu și cel mic, ajung pe partea laterală a șoldului. Când stai într-un picior, ei împiedică bazinul să se lase spre piciorul ridicat. Un cimpanzeu care merge în două picioare procedează altfel: ridică partea aceea a bazinului și își aruncă tot pieptul deasupra piciorului de sprijin, iar pașii lui sunt de circa trei ori mai depărtați lateral decât ai tăi, raportat la lungimea piciorului.
Diferența apare încă din stadiul de embrion: placa de creștere a osului iliac e rotită la om cu 90 de grade față de cea a cimpanzeului.
Picioarele
Picioare drepte, coapse înclinate
Mușchii posteriori ai coapsei (ischiogambierii) nu pot extinde șoldul unei maimuțe mari dincolo de circa 160 de grade, așa că cimpanzeul merge cu șoldurile și genunchii îndoiți, ceea ce le dă mușchilor o pârghie slabă și face fiecare pas costisitor. Șoldul tău se deschide până la 200 de grade la un pas obișnuit.
Femurele tale sunt și înclinate spre interior, către genunchi, cu 8–14 grade, ceea ce îți aduce tălpile sub corp. Bebelușii se nasc fără acest unghi. Unghiul se formează prin mers, până pe la patru–șase ani; la o persoană care n-a mers niciodată, nu s-a format.
Talpa
O talpă care împinge în loc să apuce
Degetul mare de la piciorul cimpanzeului iese în lateral, ca un police, ca să apuce crengile. Al tău stă aliniat cu celelalte și e ultimul care se desprinde de sol la fiecare pas. Talpa ta are o boltă longitudinală și una transversală; arcul transversal asigură singur peste 40% din rigiditatea tălpii, așa cum o bancnotă se întărește când o curbezi.
Bolta nu e rigidă: cât timp talpa e pe sol, oamenii îndoaie mijlocul tălpii mai mult decât cimpanzeii.
Cimpanzeii au diferit mult între ei. O femelă de 33 de ani consuma mai puțin mergând în două picioare decât în patru (0,16 față de 0,29 ml), pentru că își ținea picioarele mai drepte și tălpile mai mult timp pe sol. Pe asemenea variații ar fi putut acționa selecția naturală.
Mersul economic e doar una dintre explicațiile propuse pentru trecerea strămoșilor noștri la mersul în două picioare, iar chestiunea nu e tranșată. Un studiu ulterior a constatat că un cimpanzeu consumă cam la fel în două picioare și în patru, deci primii pași în poziție verticală poate n-au economisit nimic; economia a crescut pe măsură ce picioarele s-au lungit și s-au îndreptat.
Când s-a întâmplat
Ardipithecus ramidus, acum 4,4 milioane de ani, în Etiopia, mergea în două picioare pe sol, dar păstra un deget mare de la picior care putea apuca și încă se cățăra în copaci. O tibie de Australopithecus anamensis, veche de 3,9–4,2 milioane de ani, e deja construită pentru mers. Urmele lăsate în cenușa vulcanică umedă de la Laetoli, în Tanzania, acum 3,66 milioane de ani, arată pași ca ai noștri, pe picioare destul de drepte, deși ceva mai îndoite decât ale noastre. Lucy, veche de puțin sub 3,18 milioane de ani, are un bazin remodelat pentru mersul în două picioare și femurul înclinat. Candidații mai vechi, Sahelanthropus (6,7–7,2 milioane de ani) și Orrorin (circa șase milioane), sunt disputați: din 2020 încoace, patru studii au interpretat același femur de Sahelanthropus în sensuri opuse.
Mersul în două picioare n-a început cu un marș din pădure spre iarba deschisă. Primii hominini trăiau în mozaicuri dominate de pădure rară, cu fâșii de pădure de-a lungul râurilor, iar un studiu pe cimpanzei care trăiesc azi într-un asemenea peisaj sugerează că mersul în două picioare a fost poate util mai întâi în copaci. Corpul făcut pentru alergat pe distanțe lungi a apărut mult mai târziu, la Homo.
2 · Alergarea
Făcut să alerge pe căldură
Cimpanzeii pot sprinta, dar niciun alt primat în afară de noi nu aleargă mult timp. Începând de acum circa două milioane de ani, la primii Homo, corpul a căpătat trăsături care ajută mult mai mult la alergat decât la mers: arcuri, stabilizatoare și un sistem de răcire.
Călcâiul
Un arc în călcâi
Mușchiul gambei cimpanzeului ajunge aproape până la călcâi: tendonul lui Ahile are circa 7,5% din lungimea mușchiului și a tendonului luate împreună. Al tău are 53–65%. Întins la fiecare contact cu solul și eliberat la desprinderea piciorului, tendonul, împreună cu bolta plantară, restituie energie pe care altfel ar trebui s-o producă mușchii.
Când a apărut tendonul lung e încă în discuție. Varianta clasică îl plasează la primii Homo; un studiu din 2020 pe oasele călcâiului deduce circa 63% la specia lui Lucy.
Fesele
Fesieri care lucrează la alergat
Mușchii fesieri cântăresc la tine circa 27 de grame pe kilogram de greutate corporală, la cimpanzeu circa 17. Cel mai mare dintre ei, fesierul mare, abia lucrează când mergi pe teren plat. Intră în funcțiune când alergi și împiedică trunchiul să cadă în față la fiecare pas.
Ceafa
O bandă care ține capul stabil
Mamiferele alergătoare, precum câinii și caii, au un ligament nucal, o bandă de la baza craniului în jos pe ceafă care împiedică balansul capului. Cimpanzeii nu îl au. Tu îl ai, iar creasta de care se prinde apare prima dată pe un craniu de Homo timpuriu, vechi de circa 1,6–1,9 milioane de ani.
În 2004, Dennis Bramble și Daniel Lieberman au enumerat 26 de trăsături ale scheletului uman care ajută la alergat; niciuna nu apare la Australopithecus. Au sugerat că alergatul le-a permis primilor oameni să urmărească animalele până la epuizare, dar în același articol au remarcat că strategia „ar fi putut fi prea costisitoare energetic”. Întrebarea e încă deschisă.
Același păr, mai multă sudoare
Ai cam tot atâția foliculi de păr pe centimetru pătrat cât un cimpanzeu; firele de pe corpul tău sunt doar mai subțiri și mai scurte. Schimbarea adevărată e la glandele sudoripare: în medie de zece ori mai multe pe aceeași suprafață de piele. Sportivii transpiră de obicei între o jumătate de litru și doi litri pe oră. Și cimpanzeii transpiră; într-un mic test din 1976, doi cimpanzei tineri, pe lângă transpirație, au respirat mai repede la căldură, ca toate celelalte primate testate. Oamenii se bazează aproape numai pe transpirație; și la ei s-a descris o respirație accelerată la căldură, dar e disputat cât contribuie la răcire.
Un metabolism mai rapid
Oamenii ard pe zi cu circa 400 de kilocalorii mai mult decât cimpanzeii și bonobo cu aceeași masă corporală slabă și au mai multă grăsime: într-un studiu, 23% din greutate la bărbați și 41% la femei, față de 8–9% la cimpanzeii și bonobo din captivitate. Deși transpiră atât, oamenii își reînnoiesc zilnic cu 30–50% mai puțină apă din corp decât celelalte maimuțe mari, la aceeași mărime, activitate și climă.
3 · Aruncatul și apucatul
Făcut să arunce tare și să țină ferm
Umărul, talia și mâna ta sunt adaptate pentru două lucruri pe care un cimpanzeu le face rar: aruncatul cu forță și precizie și prinderea fermă a unui obiect între police și celelalte degete.
Umărul
O articulație a umărului orientată lateral
Articulația umărului la cimpanzeu e orientată în sus, potrivită pentru atârnat și cățărat. A ta e orientată lateral. Împreună cu o talie înaltă, care lasă șoldurile să se rotească independent de torace, asta îți permite să duci brațul mult înapoi și să înmagazinezi energie în tendoane și ligamente întinse, ca la o catapultă. Într-un studiu pe 20 de aruncători, energia aceasta putea da circa jumătate din lucrul mecanic al rotirii brațului spre interior: 54%, dacă 90% din ea este restituită.
Combinația completă apare pentru prima dată la Homo erectus, acum circa două milioane de ani.
Brațul
Cea mai rapidă mișcare a corpului tău
Când brațul se destinde, humerusul se rotește spre interior mai repede decât orice altă mișcare a corpului omenesc: în medie cu 4.290 de grade pe secundă în acel studiu și cu peste 9.000 la cei mai rapizi aruncători măsurați în alte studii. Prețul e riscul de accidentare. Ligamentele umărului și ale cotului nu sunt făcute să suporte în mod repetat un asemenea efort, de aceea aruncătorii de baseball și le rup.
Mâna
Police lung sau degete scurte
Măsurat os cu os, degetul tău mare de la mână are cam trei sferturi din lungimea inelarului; la cimpanzeu, cam jumătate. O analiză susține că, de fapt, s-au lungit degetele cimpanzeului, pentru cățărat, iar ale noastre au rămas apropiate de ale strămoșului; alți cercetători nu sunt de acord. Dintre maimuțele mari, doar omul are un mușchi separat care îndoaie vârful policelui, de unde vine prinderea fermă cu care ții o piatră în timp ce o lovești cu alta.
Mâini, unelte și un cimpanzeu crescut ca un copil
Uneltele de piatră sunt mai vechi decât genul nostru: ciocanele și așchiile de la Lomekwi, în Kenya, au 3,3 milioane de ani. Și cimpanzeii folosesc unelte. În Coasta de Fildeș sparg nuci cu ciocane de piatră, iar arheologii au dezgropat pietre folosite de cimpanzei acum 4.300 de ani.
Curbura oaselor degetelor la cimpanzeu pare moștenită, nu produsă de cățărat. O femelă de cimpanzeu pe nume Suzy, crescută ca un copil în New Yorkul anilor 1930 și lăsată rar să se cațăre, a avut totuși falange la fel de curbate ca ale unui cimpanzeu sălbatic: circa 43 de grade, față de circa 24 la oameni.
Fibrele musculare ale cimpanzeului nu sunt mai puternice decât ale noastre. Diferența stă în proporția tipurilor de fibre: circa două treimi din fibrele mușchilor de la șold și picioare ai cimpanzeului sunt de tipul rapid și puternic. În aceiași mușchi, la om, 53–69% dintre fibre sunt de tipul lent, care obosește mai greu. E un compromis între forță și rezistență.
4 · Capul
Un creier mare în spatele unei fețe mici
Creierul e ultima dintre marile schimbări și cea mai costisitoare.
Dinții
Canini mici, foarte devreme
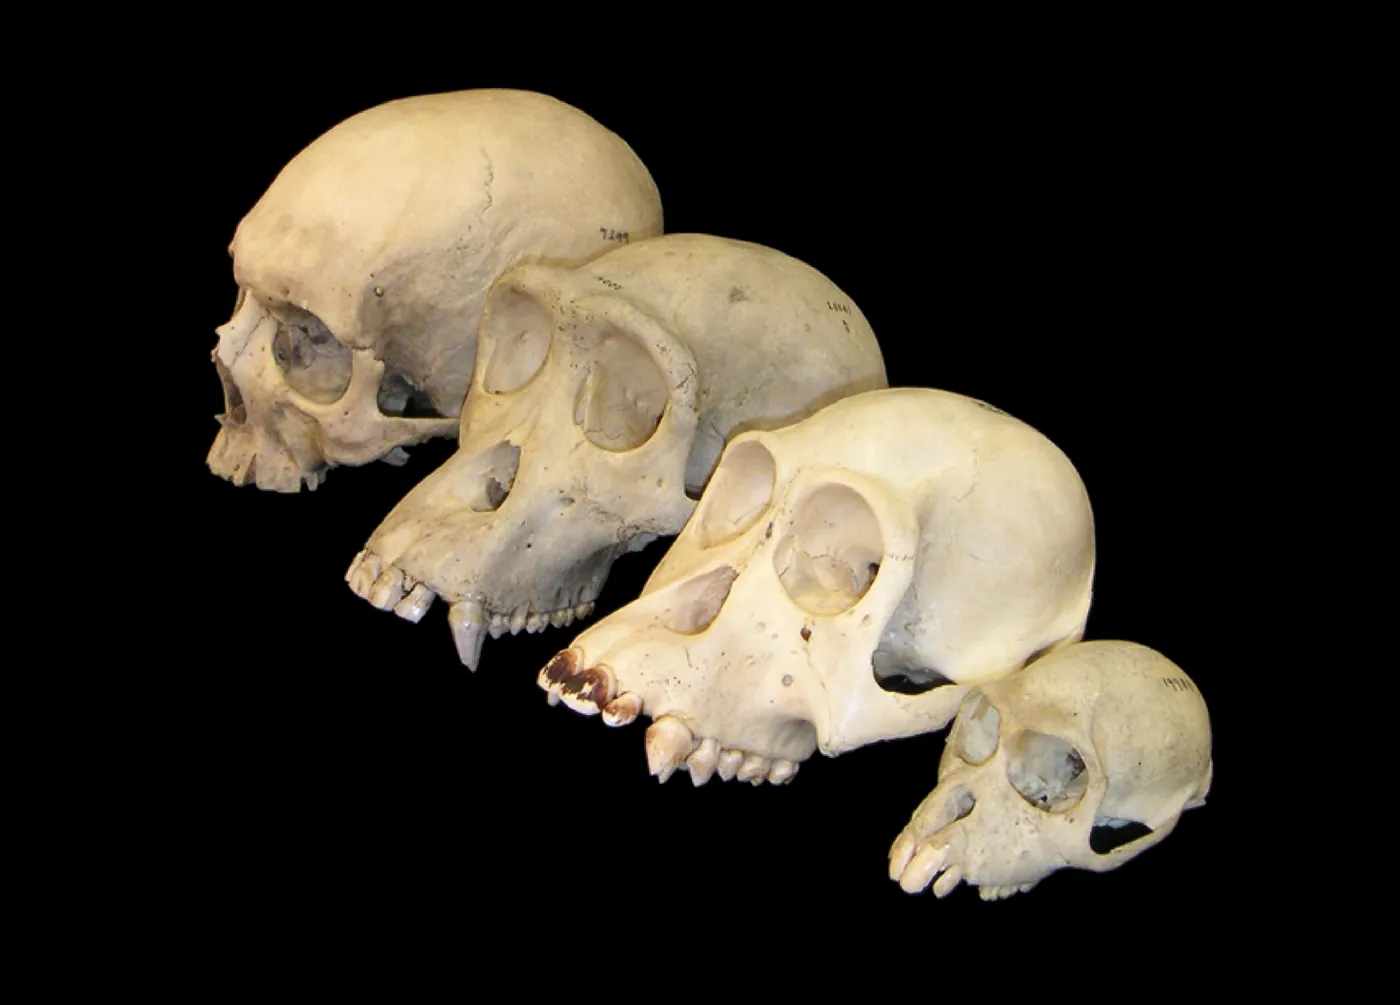
Masculii de cimpanzeu au canini superiori lungi, ascuțiți prin frecarea de dinții de jos. La Ardipithecus, acum 4,4 milioane de ani, caninii masculilor erau doar cu 6–13% mai mari decât ai femelelor, în limitele variației umane. La cimpanzei și urangutani diferența e de 20–40%. Caninii s-au micșorat devreme, cam în perioada în care a apărut mersul în două picioare.
Fața
O față trasă sub creier
Cimpanzeii petrec 37% din ziua activă mâncând, oamenii 4,7%. Un primat de mărimea ta ar trebui, după calcul, să petreacă 48%. Fața mare, făcută pentru mestecat, s-a micșorat pe măsură ce hrana a devenit mai ușor de mâncat. Dacă o treime din hrană ar fi fost carne, ar fi fost nevoie de aproape două milioane de mestecări mai puține pe an; tăierea cărnii cu unelte de piatră mai reducea numărul cu circa 5%, înainte ca gătitul să devină obișnuit.
Creierul
De trei ori și jumătate mai mult creier
Circa 384 cm³ față de 1.336. Și costă mult: la un adult, creierul consumă cam o cincime din energia corpului în repaus, față de mai puțin de o zecime la cimpanzeu, iar la un copil de patru ani ia 66%.
Cum a fost acoperit costul? Mâncând hrană crudă cum mănâncă maimuțele mari, un creier cât al tău ar avea nevoie, după un model, de peste nouă ore de mâncat pe zi, mai mult decât mănâncă orice maimuță mare. Hrana mai ușoară e o parte din răspuns. Și tubul tău digestiv e mic pentru mărimea corpului, iar mai mult de jumătate din volumul lui e în intestinul subțire; la maimuțele mari, colonul e partea cea mai mare. Ideea populară că un intestin tot mai mic a plătit un creier tot mai mare n-a rezistat unui test pe 100 de specii de mamifere.
Aciditate de hoitar în stomac
Stomacul tău gol are un pH de circa 1,5. Într-o comparație între păsări și mamifere, animalele care se hrănesc cu hoituri aveau în medie 1,3, iar omnivorele 2,9; la babuin s-a măsurat 3,7. Fiecare treaptă în jos pe scara pH înseamnă de zece ori mai multă aciditate, așa că stomacul tău e de circa 160 de ori mai acid decât al babuinului. Acidul omoară microbii, iar carnea în descompunere are din belșug, așa că o explicație e că strămoșii noștri mâncau mai multe hoituri decât se crede de obicei. O alta e că un acid puternic apără de infecțiile din hrană, oricare ar fi dieta. Iar comparația are o gaură: când a apărut studiul, aciditatea stomacului nu fusese măsurată la nicio altă maimuță antropoidă în afară de om, așa că nimeni nu știe când a apărut diferența.
Ce am pierdut ca să vorbim
Laringele coborât e adesea numit cheia vorbirii. Și laringele cimpanzeului coboară în copilărie, iar un model construit după filmări radiografice ale tractului vocal al unui macac în mișcare a putut sintetiza inteligibil „Will you marry me?” („Vrei să te căsătorești cu mine?”). Gâtul maimuței ar face față; îi lipsește controlul din partea creierului. Schimbarea din gâtul omului e o pierdere. Toate celelalte primate examinate au membrane subțiri pe corzile vocale; noi nu le avem, iar fără ele vocea e mai stabilă.
Albul ochilor
Ochii omului arată mai mult alb decât ai oricărei maimuțe mari, iar albul e cel mai uniform. Nu e o trăsătură unică: într-un eșantion, 42 din 51 de bonobo aveau albul ochilor mai deschis decât irisul, iar 48 din 50 de cimpanzei îl aveau mai închis. Două studii recente nu cad de acord dacă ochii cimpanzeului atrag atenția sau ascund direcția privirii.
Prețul unui cap mare: nașterea și o copilărie lungă
Un bebeluș e mare în raport cu mama lui, iar capul îi trece la limită prin bazinul ei, și totuși creierul lui e mai puțin dezvoltat la naștere decât al unui cimpanzeu.
Sarcina la om durează 38–40 de săptămâni, la cimpanzeu circa 32. De ce se nasc bebelușii atât de neajutorați e în discuție. Răspunsul clasic, „dilema obstetrică”, spune că un bazin destul de îngust pentru mers nu poate lăsa să treacă un cap mai mare. Un studiu din 2012 a replicat că limita o pune energia mamei: la nouă luni, sarcina e aproape de maximul pe care îl poate susține un corp, iar sarcina omului e deja cu 37 de zile mai lungă decât ar fi de așteptat pentru mărimea noastră. Studii de sinteză mai noi apără o dilemă revizuită. Strâmtoarea e reală: în țările mai sărace, travaliul blocat (distocia) cauzează, după estimări, 8–17% din toate decesele materne.
Nașterea la cimpanzei seamănă cu cea umană mai mult decât se credea. În trei nașteri filmate, puiul a ieșit cu fața în direcția opusă mamei și s-a rotit pe măsură ce ieșea, ca la om. La om, rotirea are loc în canalul nașterii și e impusă de forma lui; o explicație a acestei forme e că ajută planșeul pelvin să susțină greutatea organelor de deasupra.
Bebelușii oamenilor se nasc și grăsuți: circa 15% din greutatea lor e grăsime, în timp ce șobolanii, porcii, oile și urșii se nasc cu 1–4%. Creierul lor continuă să crească repede după naștere, iar grăsimea e considerată o rezervă pentru asta.
Vânătorii-culegători își înțarcă copiii pe la doi ani și jumătate, cimpanzeii pe la cinci, așa că mamele umane fac copii mai des (la un interval de 41 de luni, față de 67) și au grijă în același timp de cei mai mari, cu ajutorul altora. La 15 ani, un vânător-culegător mai are de trăit în medie 39 de ani, un cimpanzeu sălbatic 15. Nici menopauza nu e numai a noastră: la Ngogo, în Uganda, femelele de cimpanzeu trăiesc cam o cincime din viața adultă după ce nu se mai pot reproduce; femeile din populațiile de vânători-culegători, cam două cincimi. În alte comunități de cimpanzei studiate, aproape deloc.
Partea care poate nu servește la nimic
O singură diferență pare să îi aparțină doar omului modern, atât printre maimuțele actuale, cât și printre oamenii fosili: bărbia osoasă. S-au propus explicații de peste un secol; un studiu de sinteză din 2016 a conchis că fiecare are „neajunsuri teoretice și/sau empirice”. Un test a arătat că, pe măsură ce copiii cresc și bărbia devine mai proeminentă, mandibula nu devine mai rigidă la forțele de masticație; devine chiar mai puțin rezistentă la încovoierea pe verticală.
În ianuarie 2026, un studiu a verificat dacă bărbia însăși a fost selectată, comparând ritmul în care s-au schimbat forma mandibulei și a craniului de-a lungul arborelui maimuțelor antropoide. Din nouă trăsături ale bărbiei, doar trei au arătat selecție directă. Autorii au conchis că bărbia a apărut probabil mai ales ca efect secundar al altor schimbări, dinți din față mai mici și o față și un craniu remodelate, nu ca o adaptare în sine. Asta nu închide discuția, dar face cel mai probabil un răspuns ciudat: bărbia s-ar putea să nu servească la nimic.
Cea mai mare parte a corpului tău poate fi citită. Arcul tălpii, banda de la ceafă, articulația umărului orientată lateral și fața mică trădează fiecare un rost. Bărbia amintește că nu orice formă are unul.
Ce nu îți poate spune comparația aceasta
Cimpanzeul nu e strămoșul. Cimpanzeii s-au schimbat la fel de mult timp ca noi. Echipa care a descris Ardipithecus susține că strămoșul comun se cățăra cu grijă și nici nu mergea sprijinit pe dosul degetelor, nici nu atârna de crengi; alți cercetători interpretează aceleași oase, plus altele mai noi, ca semne ale unui strămoș asemănător cimpanzeului. Acolo unde strămoșul era altfel, o trăsătură a cimpanzeului nu e automat punctul de plecare.
Cât de diferite sunt genomurile? Aliniate literă cu literă, acolo unde se pot alinia, ADN-ul omului și al cimpanzeului diferă în circa 1,2% din poziții, circa 1% dacă se lasă deoparte diferențele din interiorul fiecărei specii. Genomurile complete ale maimuțelor mari, publicate în 2025, arată că 12,5–27,3% dintr-un genom de maimuță mare nu se aliniază simplu cu altul, deci diferența reală depinde de ce se numără. După o estimare pe baza duratei unei generații la cimpanzei, liniile s-au despărțit acum cel puțin șapte–opt milioane de ani; estimările ADN mai vechi dădeau patru–șase milioane.
Eșantioane mici. Mai multe numere de pe pagina aceasta vin de la câteva animale: cinci cimpanzei pe covorul rulant, trei care au aruncat, piele de la patru. Sunt singurele măsurători disponibile.
Surse și metodă
Scheletul e desenat din lateral. La aceeași lungime a trunchiului, membrele urmează rapoartele măsurate dintre brațe și picioare la cimpanzei și la oameni; contururile craniului, bazinului și tălpii sunt desenate după referințe anatomice și trec parte cu parte de la o formă la alta. Etapele fosile schimbă doar părțile pe care le arată fosilele citate. Mișcarea de mers e ilustrativă. Litrii de oxigen din calculatorul de mers sunt costul măsurat pe kilogram și metru, înmulțit cu greutatea și distanța alese de tine. Proporțiile creierului la naștere și graficul mărimii creierului sunt calculate din tabelele publicate. Numerele citite de pe grafice publicate sunt marcate cu „circa”. Formulări ca „făcut să” descriu ce face o trăsătură mecanic; nu înseamnă, prin ele însele, că selecția naturală a produs-o anume pentru acea funcție.
Imagini: Wikimedia Commons, cu autorul și licența sub fiecare imagine.
- Sockol MD, Raichlen DA, Pontzer H (2007). Chimpanzee locomotor energetics and the origin of human bipedalism. PNAS 104:12265–12269. pmc.ncbi.nlm.nih.gov/articles/PMC1941460/
- Pontzer H, Raichlen DA, Rodman PS (2014). Bipedal and quadrupedal locomotion in chimpanzees. J Hum Evol 66:64–82. pubmed.ncbi.nlm.nih.gov/24315239/
- Oxnard C, Obendorf PJ, Kefford BJ (2010). PLoS ONE 5:e13018 (table 4, limb proportions compiled from A. H. Schultz). pmc.ncbi.nlm.nih.gov/articles/PMC2946357/
- Russo GA, Kirk EC (2013). Foramen magnum position in bipedal mammals. J Hum Evol 65:656–670. pubmed.ncbi.nlm.nih.gov/24055116/
- McCollum MA et al. (2010). The vertebral formula of the last common ancestor of African apes and humans. J Exp Zool B 314:123–134. pubmed.ncbi.nlm.nih.gov/19688850/
- Williams SA, Pilbeam D (2021). Homeotic change in segment identity derives the human vertebral formula from a chimpanzee-like one. Am J Phys Anthropol 176:283–294. pubmed.ncbi.nlm.nih.gov/34227681/
- Whitcome KK, Shapiro LJ, Lieberman DE (2007). Fetal load and the evolution of lumbar lordosis in bipedal hominins. Nature 450:1075–1078. pubmed.ncbi.nlm.nih.gov/18075592/
- White TD et al. (2015). Neither chimpanzee nor human, Ardipithecus reveals the surprising ancestry of both. PNAS 112:4877–4884. pmc.ncbi.nlm.nih.gov/articles/PMC4413341/
- Senevirathne G et al. (2025). The evolution of hominin bipedalism in two steps. Nature 645:952–963. pmc.ncbi.nlm.nih.gov/articles/PMC12460174/
- Thompson NE et al. (2018). Step width and frontal plane trunk motion in bipedal chimpanzee and human walking. J Hum Evol 125:27–37. pubmed.ncbi.nlm.nih.gov/30502895/
- Kozma EE et al. (2018). Hip extensor mechanics and the evolution of walking and climbing capabilities in humans, apes, and fossil hominins. PNAS 115:4134–4139. pmc.ncbi.nlm.nih.gov/articles/PMC5910817/
- Tardieu C, Trinkaus E (1994). Early ontogeny of the human femoral bicondylar angle. Am J Phys Anthropol 95:183–195. pubmed.ncbi.nlm.nih.gov/7802095/
- Ward C. Bicondylar angle of the femur. CARTA Matrix of Comparative Anthropogeny. carta.anthropogeny.org/moca/topics/bicondylar-angle-femur
- Venkadesan M et al. (2020). Stiffness of the human foot and evolution of the transverse arch. Nature 579:97–100. pubmed.ncbi.nlm.nih.gov/32103182/
- Holowka NB et al. (2017). Chimpanzee and human midfoot motion during bipedal walking. J Hum Evol 104:23–31. pubmed.ncbi.nlm.nih.gov/28317554/
- Raichlen DA et al. (2010). Laetoli footprints preserve earliest direct evidence of human-like bipedal biomechanics. PLoS ONE 5:e9769. journals.plos.org/plosone/article?id=10.1371/journal.pone.000976
- Hatala KG, Demes B, Richmond BG (2016). Laetoli footprints reveal bipedal gait biomechanics different from those of modern humans and chimpanzees. Proc R Soc B 283:20160235. pmc.ncbi.nlm.nih.gov/articles/PMC5013756/
- White TD et al. (2009). Ardipithecus ramidus and the paleobiology of early hominids. Science 326:75–86. pubmed.ncbi.nlm.nih.gov/19810190/
- Leakey MG et al. (1995). New four-million-year-old hominid species from Kanapoi and Allia Bay, Kenya. Nature 376:565–571. pubmed.ncbi.nlm.nih.gov/7637803/
- Institute of Human Origins, Arizona State University. About the fossil Lucy. iho.asu.edu/aboutLucy
- Williams SA et al. (2026). Earliest evidence of hominin bipedalism in Sahelanthropus tchadensis. Sci Adv 12:eadv0130. pmc.ncbi.nlm.nih.gov/articles/PMC12758524/
- Macchiarelli R et al. (2020). Nature and relationships of Sahelanthropus tchadensis. J Hum Evol 149:102898. doi.org/10.1016/j.jhevol.2020.102898
- Daver G et al. (2022). Postcranial evidence of late Miocene hominin bipedalism in Chad. Nature 609:94–100. doi.org/10.1038/s41586-022-04901-z
- Richmond BG, Jungers WL (2008). Orrorin tugenensis femoral morphology and the evolution of hominin bipedalism. Science 319:1662–1665. doi.org/10.1126/science.1154197
- Bramble DM, Lieberman DE (2004). Endurance running and the evolution of Homo. Nature 432:345–352. doi.org/10.1038/nature03052
- McNutt EJ, DeSilva JM (2020). Evidence for an elongated Achilles tendon in Australopithecus. Anat Rec 303:2382–2391. doi.org/10.1002/ar.24387
- Payne RC et al. (2006). Morphological analysis of the hindlimb in apes and humans. J Anat 208:709–724. pmc.ncbi.nlm.nih.gov/articles/PMC2100225/
- Lieberman DE et al. (2006). The human gluteus maximus and its role in running. J Exp Biol 209:2143–2155. doi.org/10.1242/jeb.02255
- Kamberov YG et al. (2018). Comparative evidence for the independent evolution of hair and sweat gland traits in primates. J Hum Evol 125:99–105. pmc.ncbi.nlm.nih.gov/articles/PMC6289065/
- Baker LB (2017). Sweating rate and sweat sodium concentration in athletes. Sports Med 47 (Suppl 1):111–128. pmc.ncbi.nlm.nih.gov/articles/PMC5371639/
- Hiley PG (1976). The thermoregulatory responses of the galago, the baboon and the chimpanzee to heat stress. J Physiol 254:657–671. pmc.ncbi.nlm.nih.gov/articles/PMC1309216/
- Pontzer H et al. (2016). Metabolic acceleration and the evolution of human brain size and life history. Nature 533:390–392. pmc.ncbi.nlm.nih.gov/articles/PMC4942851/
- Pontzer H et al. (2021). Evolution of water conservation in humans. Curr Biol 31:1804–1810. doi.org/10.1016/j.cub.2021.02.045
- Kuzawa CW (1998). Adipose tissue in human infancy and childhood: an evolutionary perspective. Yearb Phys Anthropol 41:177–209. doi.org/10.1002/(SICI)1096-8644(1998)107:27+%3C177::AID-AJPA7%3E
- O’Neill MC et al. (2017). Chimpanzee super strength and human skeletal muscle evolution. PNAS 114:7343–7348. pmc.ncbi.nlm.nih.gov/articles/PMC5514706/
- Roach NT et al. (2013). Elastic energy storage in the shoulder and the evolution of high-speed throwing in Homo. Nature 498:483–486 (with supplementary information). doi.org/10.1038/nature12267
- Almécija S, Smaers JB, Jungers WL (2015). The evolution of human and ape hand proportions. Nat Commun 6:7717. pmc.ncbi.nlm.nih.gov/articles/PMC4510966/
- Tocheri MW et al. (2008). The evolutionary history of the hominin hand since the last common ancestor of Pan and Homo. J Anat 212:544–562. pmc.ncbi.nlm.nih.gov/articles/PMC2409097/
- Wallace IJ, Burgess ML, Patel BA (2020). Phalangeal curvature in a chimpanzee raised like a human. PNAS 117:11223–11225. pmc.ncbi.nlm.nih.gov/articles/PMC7260939/
- Harmand S et al. (2015). 3.3-million-year-old stone tools from Lomekwi 3, West Turkana, Kenya. Nature 521:310–315. doi.org/10.1038/nature14464
- Mercader J et al. (2007). 4,300-year-old chimpanzee sites and the origins of percussive stone technology. PNAS 104:3043–3048. pmc.ncbi.nlm.nih.gov/articles/PMC1805589/
- DeSilva JM (2011). A shift toward birthing relatively large infants early in human evolution. PNAS 108:1022–1027. pmc.ncbi.nlm.nih.gov/articles/PMC3024680/
- Du A et al. (2018). Pattern and process in hominin brain size evolution are scale-dependent. Proc R Soc B 285:20172738 (table S1). pmc.ncbi.nlm.nih.gov/articles/PMC5832710/
- Kuzawa CW et al. (2014). Metabolic costs and evolutionary implications of human brain development. PNAS 111:13010–13015. pmc.ncbi.nlm.nih.gov/articles/PMC4246958/
- Fonseca-Azevedo K, Herculano-Houzel S (2012). Metabolic constraint imposes tradeoff between body size and number of brain neurons in human evolution. PNAS 109:18571–18576. pmc.ncbi.nlm.nih.gov/articles/PMC3494886/
- Organ C et al. (2011). Phylogenetic rate shifts in feeding time during the evolution of Homo. PNAS 108:14555–14559. pmc.ncbi.nlm.nih.gov/articles/PMC3167533/
- Zink KD, Lieberman DE (2016). Impact of meat and Lower Palaeolithic food processing techniques on chewing in humans. Nature 531:500–503. doi.org/10.1038/nature16990
- Suwa G et al. (2021). Canine sexual dimorphism in Ardipithecus ramidus was nearly human-like. PNAS 118:e2116630118. pmc.ncbi.nlm.nih.gov/articles/PMC8670482/
- Milton K (1999). Nutritional characteristics of wild primate foods. Nutrition 15:488–498. doi.org/10.1016/S0899-9007(99)00078-7
- Navarrete A, van Schaik CP, Isler K (2011). Energetics and the evolution of human brain size. Nature 480:91–93. doi.org/10.1038/nature10629
- Nishimura T et al. (2003). Descent of the larynx in chimpanzee infants. PNAS 100:6930–6933. pmc.ncbi.nlm.nih.gov/articles/PMC165807/
- Fitch WT et al. (2016). Monkey vocal tracts are speech-ready. Sci Adv 2:e1600723. pmc.ncbi.nlm.nih.gov/articles/PMC5148209/
- Nishimura T et al. (2022). Evolutionary loss of complexity in human vocal anatomy as an adaptation for speech. Science 377:760–763. pubmed.ncbi.nlm.nih.gov/35951711/
- Perea-García JO et al. (2019). Scleral pigmentation leads to conspicuous, not cryptic, eye morphology in chimpanzees. PNAS 116:19248–19250. pmc.ncbi.nlm.nih.gov/articles/PMC6765245/
- Caspar KR et al. (2021). Ocular pigmentation in humans, great apes, and gibbons is not suggestive of communicative functions. Sci Rep 11:12994. pmc.ncbi.nlm.nih.gov/articles/PMC8217224/
- Dunsworth HM et al. (2012). Metabolic hypothesis for human altriciality. PNAS 109:15212–15216. pmc.ncbi.nlm.nih.gov/articles/PMC3458333/
- Grunstra NDS et al. (2023). There is an obstetrical dilemma. Am J Biol Anthropol 181:535–544. pmc.ncbi.nlm.nih.gov/articles/PMC10952510/
- Haeusler M et al. (2021). The obstetrical dilemma hypothesis: there’s life in the old dog yet. Biol Rev 96:2031–2057. pmc.ncbi.nlm.nih.gov/articles/PMC8518115/
- Stansfield E et al. (2021). The evolution of pelvic canal shape and rotational birth in humans. BMC Biol 19:224. pmc.ncbi.nlm.nih.gov/articles/PMC8507337/
- Hirata S et al. (2011). Mechanism of birth in chimpanzees: humans are not unique among primates. Biol Lett 7:686–688. pmc.ncbi.nlm.nih.gov/articles/PMC3169058/
- Kaplan H et al. (2000). A theory of human life history evolution. Evol Anthropol 9:156–185. doi.org/10.1002/1520-6505(2000)9:4%3C156::AID-EVAN5%3E3.0.CO;2-7
- Wood BM et al. (2023). Demographic and hormonal evidence for menopause in wild chimpanzees. Science 382:eadd5473. pmc.ncbi.nlm.nih.gov/articles/PMC10645439/
- Pampush JD, Daegling DJ (2016). The enduring puzzle of the human chin. Evol Anthropol 25:20–35. pubmed.ncbi.nlm.nih.gov/26800015/
- von Cramon-Taubadel N, Scott JE, Robinson CA, Schroeder L (2026). Is the human chin a spandrel? Insights from an evolutionary analysis of ape craniomandibular form. PLoS ONE 21:e0340278. doi.org/10.1371/journal.pone.0340278
- White MD (2018). Panting as a human heat loss thermoeffector. Handb Clin Neurol 156:233–247. doi.org/10.1016/b978-0-444-63912-7.00014-x
- Tsuji B et al. (2016). Characteristics of hyperthermia-induced hyperventilation in humans. Temperature 3:146–160. pmc.ncbi.nlm.nih.gov/articles/PMC4879782/
- Beasley DE, Koltz AM, Lambert JE, Fierer N, Dunn RR (2015). The evolution of stomach acidity and its relevance to the human microbiome. PLoS ONE 10:e0134116. pmc.ncbi.nlm.nih.gov/articles/PMC4519257/
- Drummond-Clarke RC et al. (2022). Wild chimpanzee behavior suggests that a savanna-mosaic habitat did not support the emergence of hominin terrestrial bipedalism. Sci Adv 8:eadd9752. pmc.ncbi.nlm.nih.gov/articles/PMC9750136/
- Holton NE et al. (2015). The ontogeny of the chin: an analysis of allometric and biomechanical scaling. J Anat 226:549–559. pubmed.ncbi.nlm.nih.gov/25865897/
- Chimpanzee Sequencing and Analysis Consortium (2005). Initial sequence of the chimpanzee genome and comparison with the human genome. Nature 437:69–87. doi.org/10.1038/nature04072
- Yoo D et al. (2025). Complete sequencing of ape genomes. Nature 641:401–418. pmc.ncbi.nlm.nih.gov/articles/PMC12058530/
- Langergraber KE et al. (2012). Generation times in wild chimpanzees and gorillas suggest earlier divergence times in great ape and human evolution. PNAS 109:15716–15721. pmc.ncbi.nlm.nih.gov/articles/PMC3465451/
- Tyson E (1699). Orang-Outang, sive Homo Sylvestris: or, the Anatomy of a Pygmie Compared with that of a Monkey, an Ape, and a Man. London. archive.org/details/orangoutangsiveh00tyso